Streszczenie
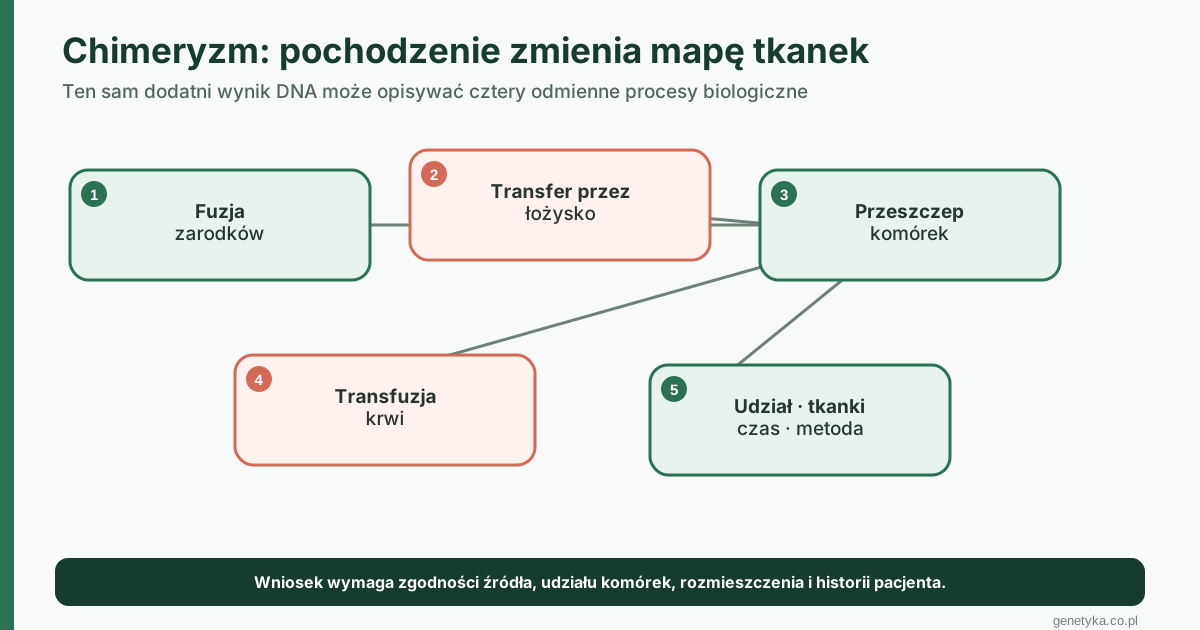
Chimeryzm oznacza obecność w jednym człowieku komórek wywodzących się z co najmniej dwóch różnych zygot. Nie jest tym samym co mozaicyzm, w którym różne linie powstają przez mutacje już po zapłodnieniu jednej zygoty, ani tym bardziej co przypadkowa mieszanina materiału dwóch osób w probówce. Źródłem chimeryzmu może być połączenie dwóch wczesnych zarodków, wymiana komórek między bliźniętami, dwukierunkowy ruch komórek przez łożysko, przeszczepienie narządu lub komórek krwiotwórczych, a w szczególnych warunkach także przetoczenie krwi.
Znaczenie wyniku zależy od skali i topografii. Niewielka populacja komórek płodowych może utrzymywać się u matki przez dziesięciolecia, lecz jej wykrycie nie dowodzi ani naprawy tkanki, ani wywołania choroby. Po przeszczepieniu szpiku krew może reprezentować genom dawcy, podczas gdy nabłonek policzka, mieszki włosowe i gonady zachowują genom biorcy. Tetragametyczna chimera może natomiast mieć odmienne proporcje dwóch linii w różnych narządach, dlatego ujemny wynik z jednej tkanki nie wyklucza zjawiska w innej.
Artykuł porządkuje rodzaje chimeryzmu, metody jego wykrywania i ograniczenia wnioskowania. Pokazuje konsekwencje dla diagnostyki genetycznej, transplantologii i genetyki sądowej oraz wyjaśnia, dlaczego relacje mikrochimeryzmu z autoimmunizacją, nowotworami i regeneracją pozostają w dużej części hipotezami zależnymi od rodzaju komórki, czasu i miejsca.
Jedno ciało nie zawsze oznacza jedno pochodzenie komórek
W szkolnym modelu każda komórka człowieka jest potomkiem jednej zygoty i ma ten sam genom. Model jest użyteczny, ale biologicznie niepełny. Komórki mogą różnić się wskutek mutacji powstających w trakcie rozwoju, mogą też pochodzić od innego osobnika. Te dwa mechanizmy prowadzą do podobnego obrazu laboratoryjnego — więcej niż jednego profilu genetycznego — lecz mają zupełnie inną genezę.
Chimeryzm dotyczy współistnienia linii wywodzących się z dwóch lub większej liczby zygot. Mozaicyzm powstaje w obrębie potomstwa jednej zygoty. Jeżeli wariant pojawi się podczas trzeciego podziału zarodka, część późniejszych tkanek może go nieść, a część nie; nadal jest to jednak jedno genealogiczne źródło. W chimerze różnice istniały już pomiędzy dwiema zapłodnionymi komórkami jajowymi lub zostały wprowadzone z komórkami innego człowieka.
Definicja ma konsekwencje praktyczne. Dwa profile STR w próbce krwi mogą oznaczać przeszczepienie komórek krwiotwórczych, ciążowy mikrochimeryzm, tetragametyzm, domieszkę materiału albo błąd identyfikacji. Sam wykres pików nie wybiera mechanizmu. Potrzebne są historia kliniczna, proporcje alleli, analiza wielu tkanek i kontrola łańcucha próbki.
Chimera, mozaika, hybryda i mieszanina
Te terminy odpowiadają na różne pytania:
| Pojęcie | Skąd pochodzą różne genomy | Gdzie znajduje się różnica | Przykład | Czego sama nazwa nie mówi |
|---|---|---|---|---|
| chimera | z co najmniej dwóch zygot lub odrębnych osób | w różnych komórkach | połączenie zarodków, przeszczep HSC | jaka jest proporcja i topografia linii |
| mikrochimera | jak wyżej, ale druga populacja jest niewielka | zwykle w małej frakcji komórek | komórki płodu u matki | czy komórki są żywe i funkcjonalne |
| mozaika | z jednej zygoty, po zmianie postzygotycznej | w części potomnych komórek | somatyczny wariant PIK3CA | kiedy i w której linii powstała zmiana |
| hybryda | połączenie materiału rodzicielskiego w tej samej zygocie | zasadniczo w każdej komórce potomnej | mieszanie genomów gatunków przy zapłodnieniu | czy rozwój jest możliwy i płodny |
| mieszanina próbki | materiał dwóch osób po pobraniu lub podczas pobrania | w pojemniku, niekoniecznie w organizmie | dwa nabłonki na wymazie | czy w badanym człowieku istnieje chimeryzm |
W biologii molekularnej słowo „chimeryczny” bywa też używane wobec pojedynczej cząsteczki, na przykład białka fuzyjnego lub odczytu sekwencyjnego sklejonego z dwóch fragmentów. To odrębny poziom opisu. Chimeryczne RNA nie czyni człowieka chimerą komórkową, a chimeryczny odczyt PCR może być artefaktem amplifikacji.
Nie ma jednej granicy procentowej
Mikrochimeryzm często definiuje się jako populację poniżej 1% komórek, ale granica jest umowna i zależy od dyscypliny.1 W transplantologii „mixed chimerism” może opisywać klinicznie istotne proporcje dawcy i biorcy w krwiotworzeniu. W badaniach ciąży wykrywa się czasem jedną komórkę lub kilka kopii sekwencji na setki tysięcy komórek gospodarza. Wynik 0,1% nie ma więc uniwersalnego znaczenia.
Trzeba podać mianownik: procent wszystkich leukocytów, konkretnej frakcji, jąder w przekroju czy cząsteczek DNA. Trzeba też oddzielić liczbę komórek od liczby kopii celu. Komórka męska wnosi jedną kopię chromosomu Y, ale komórka poliploidalna, fragment pozakomórkowego DNA lub transplantowany narząd zmienia relację pomiędzy sygnałem molekularnym a liczbą żywych komórek.
Chimeryzm tetragametyczny
Najbardziej klasyczny mechanizm zaczyna się od dwóch oddzielnych zapłodnień. Powstają dwie zygoty, każda z własną parą genomów rodzicielskich. Jeżeli bardzo wczesne zarodki połączą się i będą dalej rozwijać jako jeden organizm, powstaje chimera tetragametyczna — „tetra” odnosi się do czterech gamet, nie do czterech równych genomów w każdej komórce.
Nie jest to zwykłe sklejenie dwóch kompletnych ciał. Fuzja zachodzi na etapie, gdy komórki mogą jeszcze wejść do wspólnych linii rozwojowych. Późniejsze rozmieszczenie zależy od tego, które komórki założycielskie trafiły do którego przedziału. Linia A może dominować we krwi, linia B w nabłonku jamy ustnej, a gonady mogą zawierać proporcje inne niż oba łatwo dostępne materiały.
Wynikiem nie musi być widoczna nieprawidłowość. Czasem wskazówką jest niezgodność grup krwi, nietypowy układ pigmentacji albo rozwój płciowy, lecz wiele przypadków wychodzi na jaw dopiero przy badaniu pokrewieństwa, kwalifikacji transplantacyjnej lub analizie nieoczekiwanego genotypu.2 Brak cechy zewnętrznej nie obala mechanizmu; obecność asymetrii ciała go nie potwierdza.
Dlaczego proporcje dwóch linii są tkankowo swoiste
Wczesny zarodek dzieli się na kolejne przedziały i listki zarodkowe. Niewielka różnica liczby komórek założycielskich, proliferacji albo przeżycia może zostać wzmocniona. Jeśli jedna linia częściej zasili mezodermę, jej udział może być duży we krwi i tkance łącznej, ale mały w nabłonkach. Selekcja może być neutralna, zależna od wariantu genetycznego albo od lokalnego przypadku rozwojowego.
Dlatego nie istnieje „procent chimeryzmu człowieka” bez wskazania tkanki, typu komórki i czasu. Nawet wynik krwi zmienia się, gdy klonalnie rozszerza się określona komórka macierzysta. Próbka policzkowa nie jest idealnie czystym nabłonkiem: może zawierać leukocyty. Włos wyrwany z cebulką, paznokieć, mocz i biopsja również mają mieszaną anatomię. Interpretacja wymaga wiedzy o tym, co faktycznie trafiło do ekstrakcji.
Chimeryzm bliźniaczy
Bliźnięta dwuzygotyczne mają różne genomy, lecz ich łożyska i krążenia mogą pozostawać w kontakcie. Anastomozy naczyniowe umożliwiają przechodzenie komórek krwiotwórczych. Jeżeli komórki macierzyste jednego płodu zasiedlą szpik drugiego, po urodzeniu można wykryć dwie linie we krwi. Nie oznacza to automatycznie szerokiego chimeryzmu wszystkich narządów.
Szczególny model stanowią marmozety, u których wspólne łożysko sprzyja intensywnej wymianie między miotem. Wyników tego gatunku nie można jednak bezpośrednio przenosić na człowieka. Przegląd naturalnych chimer wskazuje, że u ludzi dobrze udokumentowana jest wymiana krwiotwórcza, natomiast twierdzenia o powszechnym bliźniaczym chimeryzmie ludzkiej linii płciowej nie mają analogicznej podstawy.2
„Zanikający bliźniak” jest możliwym źródłem obcej linii, ale nie powinien być automatycznym wyjaśnieniem każdego dodatkowego allelu. Wczesne obumarcie zarodka, transfer pojedynczych komórek i pełna fuzja zarodków są różnymi scenariuszami. Ich odróżnienie może być niemożliwe po latach, jeśli nie zachowano danych prenatalnych i próbek rodzinnych.
Dwukierunkowy ruch komórek przez łożysko
Łożysko oddziela, ale nie izoluje całkowicie krążenia ciężarnej i płodu. Przez barierę przechodzą cząsteczki, pęcherzyki, wolne DNA oraz całe komórki. Mikrochimeryzm płodowy u matki oznacza utrzymanie komórek pochodzących od płodu. Mikrochimeryzm matczyny u dziecka oznacza obecność komórek matki w potomstwie. Są to kierunki lustrzane, lecz środowiska immunologiczne i rozwojowe nie są lustrzane.
Ruch rozpoczyna się podczas ciąży i może nasilać się wraz ze zmianami bariery łożyskowej, stanem zapalnym, porodem lub powikłaniami. Nie znamy jednak kompletnej mapy czasu, fenotypów komórek i tras przejścia u człowieka. Badania perfuzowanego łożyska ex vivo pozwalają obserwować barierę i kierunek transportu, ale nie odtwarzają miesięcy ciąży, odporności całego organizmu ani późniejszego zasiedlenia nisz.3
Komórki płodu mogą przetrwać dłużej niż ciąża
Klasyczne badania wykrywały sekwencje chromosomu Y w krwi lub tkankach kobiet wiele lat po ciąży z płodem męskim. Taki marker był praktyczny, lecz obejmował tylko część ciąż i nie wskazywał jednoznacznie źródła: wcześniejsza utrata ciąży, starszy brat przekazujący komórki pośrednio przez matkę, transfuzja lub przeszczep mogły tworzyć alternatywę.
Obecnie wykorzystuje się informacyjne allele HLA, insertion/deletion polymorphisms, SNP, STR i sekwencjonowanie. Wykrycie unikalnego allelu płodu w komórce matki jest mocniejsze niż sam sygnał Y, jeśli genotypy rodzinne pozwalają wykluczyć inne źródła. Nadal trzeba pokazać, że wynik nie pochodzi z wolnego DNA, kontaminacji lub błędu amplifikacji.
Wieloletnie utrzymanie sugeruje albo długowieczność części komórek, albo zasiedlenie niszy przez komórki zdolne do samoodnowy. Nie dowodzi, że każda wykryta komórka ma szeroką potencję macierzystą. Fenotyp powierzchniowy, lokalizacja i obecność transkryptu nie wystarczają do wykazania trwałej regeneracji tkanki.
Matczyne komórki w organizmie dziecka
Transfer matczyno-płodowy zachodzi w czasie, gdy rozwijają się narządy i tolerancja immunologiczna dziecka. Komórki matczyne wykrywano w krwi i różnych tkankach potomstwa. Ich udział jest zwykle mały, a topografia niejednorodna. Z punktu widzenia odporności szczególnie interesujące są nieodziedziczone antygeny matczyne: dziecko nie ma kodujących je alleli, ale mogło zetknąć się z prezentującymi je komórkami w okresie kształtowania repertuaru limfocytów.
Z tego wynika hipoteza o tolerancji lub regulacji odpowiedzi, nie prosta reguła kliniczna. Ten sam obcy antygen może w innym kontekście prowadzić do uczulenia. Wynik zależy od dawki, komórki prezentującej, zapalenia, wieku i lokalizacji. Obecność matczynych komórek nie pozwala sama przewidzieć przebiegu choroby ani wyniku przyszłego przeszczepienia.
Ciąża nie kończy się jedną wymianą
Kobieta może mieć komórki z kilku ciąż, a płód może otrzymać od matki komórki pochodzące z jej wcześniejszej ciąży. Powstaje wielopokoleniowa sieć mikrochimeryzmu. To pokazuje ograniczenie prostych testów wykorzystujących płeć chromosomalną: sygnał Y u kobiety nie identyfikuje automatycznie konkretnego syna.
Również ciąża zakończona bardzo wcześnie może pozostawić sygnał, a brak udokumentowanego porodu nie oznacza braku ekspozycji. Wywiad reprodukcyjny jest ważny, lecz może być niepełny albo nie rozstrzygać źródła. Badanie powinno formułować zbiór konkurencyjnych hipotez, a nie dopasowywać jedną historię do dodatniego PCR.
Przeszczepienie krwiotwórczych komórek macierzystych
Po allogenicznym przeszczepieniu HSC celem jest odbudowanie krwiotworzenia komórkami dawcy. Jeżeli wszczepienie jest pełne, leukocyty krwi obwodowej i znaczna część komórek szpiku noszą profil dawcy. Biorca nie zmienia przez to genomu nabłonków, neuronów czy komórek rozrodczych. Staje się chimerą transplantacyjną o topografii narzuconej przez przeszczepioną linię.
W praktyce monitoruje się udział dawcy i biorcy. Analiza całej krwi może ukrywać zmianę w konkretnej frakcji; dlatego w określonych chorobach bada się osobno komórki mieloidalne, limfocyty T lub inne populacje. Spadek chimeryzmu dawcy może sygnalizować niewydolność wszczepu albo nawrót, ale interpretacja zależy od choroby, kondycjonowania, czasu i czułości testu.4
STR pozostaje powszechną metodą rutynową. qPCR, digital PCR i NGS mogą zwiększać czułość, lecz bardziej czuły pomiar nie jest automatycznie bardziej trafną decyzją. Wykrycie śladowej frakcji biorcy po HSC nie zawsze wymaga interwencji; trzeba znać dynamikę, linię komórkową i walidowany próg kliniczny.5
Narząd lity także przenosi komórki
Przeszczepiona nerka, wątroba, płuco czy serce zachowują komórki dawcy. Graft jest więc dużym, anatomicznie zlokalizowanym przedziałem obcego pochodzenia. Jednocześnie komórki biorcy napływają do niego jako leukocyty, komórki śródbłonkowe lub populacje uczestniczące w naprawie. Nie każda komórka znaleziona w narządzie pochodzi z pierwotnego graftu.
Komórki dawcy mogą też opuszczać przeszczep i pojawiać się w krążeniu biorcy. Taki mikrochimeryzm transplantacyjny jest biomarkerem ruchu komórek, a nie automatycznym dowodem tolerancji. Stabilna tolerancja wymaga akceptacji graftu bez immunosupresji przy zachowaniu odpowiedzi na antygeny trzeciej strony. Sama obecność DNA dawcy nie spełnia tej definicji.6
W protokołach łączących przeszczepienie narządu z komórkami krwiotwórczymi próbuje się celowo wytworzyć mieszany chimeryzm i tolerancję dawcy. Wyniki wybranych serii ludzkich są obiecujące, ale toksyczność kondycjonowania, ryzyko GVHD, trwałość stanu i dobór biorców ograniczają rutynowe zastosowanie.7
Transfuzja: obecność komórek to nie zawsze trwałe wszczepienie
Preparat krwinek czerwonych zawiera po leukoredukcji znacznie mniej leukocytów, lecz nie jest logicznie równy zeru komórek dawcy. Krótkotrwały sygnał po transfuzji może odzwierciedlać krążące komórki, które z czasem znikną. Transfusion-associated microchimerism oznacza trwalsze utrzymanie populacji dawcy i był opisywany szczególnie po masywnych transfuzjach u ciężko rannych.8
Starsze kohorty wykazywały wieloletni mikrochimeryzm mimo leukoredukcji, niekiedy z udziałem kilku linii leukocytarnych.9 Nowsze prospektywne badanie współczesnych pacjentów urazowych potwierdziło sygnały krótkotrwałe, ale znalazło tylko jeden przypadek trwały w dużej kohorcie.10 To nie sprzeczność do usunięcia przez wybranie wygodniejszej pracy. Zmieniały się procesy preparatyki, filtry, czas przechowywania, populacje i testy. Aktualne ryzyko zależy od kontekstu i nie powinno być opisywane jedną historyczną częstością.
Mikrochimeryzmu nie należy też utożsamiać z transfusion-associated graft-versus-host disease. TA-GVHD jest ciężkim zespołem wynikającym z proliferacji immunokompetentnych limfocytów dawcy i ataku na tkanki biorcy. Trwały niski poziom komórek może istnieć bez klinicznego GVHD; wykrycie DNA nie diagnozuje tego powikłania.
Co właściwie mierzy test
Każda metoda ma własny measurand:
| Metoda | Typowy sygnał | Główna zaleta | Najważniejsze ograniczenie |
|---|---|---|---|
| kariotyp/FISH | chromosom lub locus w pojedynczym jądrze | lokalizacja komórkowa | mała liczba loci i ograniczona czułość |
| STR | proporcje alleli dawcy i biorcy | informacyjność i rutyna po HSC | ograniczenie przy bardzo niskiej frakcji i stutter |
| allele-specific qPCR | określony allel w tle gospodarza | wysoka czułość | kalibracja, nieswoistość i zależność od markera |
| digital PCR | liczba dodatnich partycji | precyzja dla rzadkiego celu | kopia DNA nie zawsze odpowiada żywej komórce |
| NGS/deep sequencing | wiele wariantów jednocześnie | szeroka identyfikacja źródła | błędy tła, koszt i złożona walidacja |
| single-cell | profil konkretnej komórki | odróżnia komórkę od wolnego DNA | dropout, doublety i mała reprezentacja tkanki |
| histologia + genotypowanie | położenie i pochodzenie | wiąże linię z anatomią | trudna walidacja rzadkich komórek |
PCR odpowiada, czy w ekstrakcie była docelowa sekwencja powyżej granicy detekcji. Nie odpowiada sam, czy sekwencja była w całej komórce, czy komórka żyła, jaki miała fenotyp i co robiła. Barwienie odpowiada, czy w danym miejscu wykryto epitop. Nie dowodzi pochodzenia z określonej zygoty, jeśli marker nie jest genetycznie swoisty.
Czułość zwiększa zarówno wiedzę, jak i liczbę pułapek
Przy rzadkim celu pojedyncza cząsteczka z poprzedniej reakcji, kropla aerozolu albo komórka osoby pobierającej może stworzyć wynik. Potrzebne są osobne strefy pracy, blanki ekstrakcyjne, kontrole ujemne, powtórzenia z niezależnej ekstrakcji i ortogonalne markery. Dodatni sygnał na granicy detekcji nie powinien być raportowany jak stabilny profil większościowy.
Drugi problem to allelic dropout i sampling. Jeśli prawdziwa frakcja wynosi jedną komórkę na milion, mała porcja materiału może nie zawierać żadnej. Dwa ujemne powtórzenia nie wykluczają nierównomiernego mikrochimeryzmu. Z kolei rozdrobnienie tkanki niszczy topografię: średnia dla biopsji nie mówi, czy komórki były rozsiane, czy tworzyły małe skupisko.
Trzeci problem to doublety w single-cell. Dwie komórki uwięzione w jednej kropli mogą wyglądać jak jedna komórka o dwóch genomach lub mieszanym transkryptomie. Chimeryczny wynik wymaga reguł odrzucania doubletów oraz potwierdzenia wariantami genomowymi, nie wyłącznie ekspresją markerów dwóch typów.
Mapa tkanek zamiast jednego wymazu
Podejrzenie konstytucyjnego chimeryzmu wymaga materiałów reprezentujących różne linie rozwojowe i różnego stopnia domieszki krwi. Krew jest dobrym materiałem dla chimeryzmu hematopoetycznego, ale może być najbardziej myląca po HSC. Wymaz policzkowy jest dostępny, lecz zawiera leukocyty. Cebulki włosów i paznokcie dostarczają dodatkowych przedziałów, choć także nie są doskonałe.
Najmocniejszy projekt zestawia kilka tkanek, informacyjne markery rodzinne oraz historię transplantacji, transfuzji, ciąży i bliźniactwa. W razie wyniku sądowego trzeba powtórzyć pobranie z kontrolowanym łańcuchem dowodowym. Biopsja narządu tylko w celu potwierdzenia ciekawości genetycznej byłaby nieproporcjonalna; dobór materiału musi uwzględniać ryzyko kliniczne.
Diagnostyka genetyczna: krew może nie być genomem pacjenta
Po przeszczepieniu HSC DNA z leukocytów odpowiada w dużej mierze dawcy. Badanie germline wykonane z krwi może więc znaleźć wariant dawcy albo przeoczyć wariant biorcy. Laboratorium musi znać historię transplantacji i dobrać materiał niekrwiotwórczy. Nawet wymaz policzkowy może być skażony leukocytami dawcy, dlatego interpretacja proporcji i wybór tkanki są ważne.
W tetragametyzmie problem jest inny: oba genomy należą do biologicznej historii badanego człowieka, lecz nie każdy występuje w każdej tkance. Wariant patogenny może znajdować się tylko w linii budującej narząd objęty chorobą. Ujemna krew nie wyklucza wariantu w tkance docelowej, a dodatni wynik z małej frakcji wymaga ustalenia, czy i gdzie może wywoływać fenotyp.
Raport nie powinien sprowadzać sytuacji do „wynik niejednoznaczny”. Powinien podać materiał, obserwowane frakcje, możliwe mechanizmy, ograniczenia detekcji oraz rekomendowany materiał rozstrzygający. To samo dotyczy badań prenatalnych, w których vanishing twin może wpływać na wolne DNA i tworzyć wynik reprezentujący nie tylko aktualnie rozwijający się płód.
Grupy krwi i immunohematologia
Dwie populacje erytrocytów mogą dawać mixed-field agglutination. Przyczyną może być niedawna transfuzja, przeszczepienie HSC, chimeryzm bliźniaczy albo tetragametyczny. Serologia widzi fenotyp antygenowy krwinek, a nie całą anatomię pochodzenia.
Po HSC układ ABO dawcy i biorcy może różnić się, a przejście fenotypu zachodzi w czasie. Pozostałe krwinki biorcy, nowo powstające krwinki dawcy i transfuzje tworzą dynamiczną mieszaninę. Wynik trzeba osadzić w osi czasu. Zaskakująca grupa krwi nie powinna prowadzić od razu do historii o fuzji zarodków.
Genetyka sądowa: osoba może mieć więcej niż jeden profil
Standardowy profil STR jest bardzo silnym identyfikatorem, ale założenie „jedna osoba — jeden profil we wszystkich tkankach” ma wyjątki. Po HSC plama krwi może odpowiadać dawcy, podczas gdy ślina, nasienie lub włos zawierają w różnym stopniu profil biorcy. Tetragametyczna chimera może pozostawić odmienne profile zależnie od tkanki.
Nie oznacza to, że identyfikacja DNA staje się niewiarygodna. Oznacza, że nieoczekiwana niezgodność wymaga procesu diagnostycznego. Należy sprawdzić:
- integralność i historię próbki;
- możliwość mieszaniny wielu osób;
- historię HSC, narządu i transfuzji;
- powtórne, niezależne pobranie;
- profile z kilku tkanek;
- pokrewieństwo między dodatkowymi profilami;
- proporcje i stabilność sygnału.
W analizie pokrewieństwa chimeryzm może prowadzić do pozornego wykluczenia rodzicielstwa, jeżeli badana tkanka nie reprezentuje linii, z której powstały gamety. Znane opisy przypadków są ważnymi demonstracjami mechanizmu, lecz nie uzasadniają tezy, że jest to częsta przyczyna sporów. Najpierw należy wykluczyć znacznie częstsze błędy przedanalityczne i interpretacyjne.
Transplantologia: chimeryzm jako stan, biomarker i interwencja
To samo słowo pełni w transplantologii trzy role. Po pierwsze opisuje stan biologiczny biorcy. Po drugie jest biomarkerem wszczepienia, odrzucania lub nawrotu. Po trzecie może być celowo indukowaną interwencją służącą tolerancji.
Te role nie są zamienne. Wysoki udział dawcy w mieloidalnej frakcji po HSC może być pożądany, a ten sam kierunek zmiany w innym protokole nie musi oznaczać sukcesu. Mikrokomórki dawcy po przeszczepieniu wątroby mogą korelować z przebiegiem, lecz nie ustanawiają tolerancji. Protokół tolerogenny ocenia się przez możliwość bezpiecznego odstawienia immunosupresji, funkcję graftu, brak donor-specific response i brak GVHD, nie przez sam PCR.
Analiza chimeryzmu jest również zależna od choroby. W nowotworze krwi rosnąca frakcja biorcy może reprezentować nawrót, ale może też obejmować prawidłowe komórki. Minimal residual disease i chimeryzm mierzą inne cechy; powinny się uzupełniać, nie zastępować.11
Mikrochimeryzm a autoimmunizacja
Komórki genetycznie obce znajdowano częściej lub w innych miejscach w niektórych chorobach autoimmunizacyjnych. Możliwe mechanizmy obejmują rozpoznanie alloantygenów, udział mikrochimerycznych komórek odpornościowych, zmianę tolerancji albo zasiedlenie uszkodzonej tkanki. Żaden z tych mechanizmów nie wynika automatycznie z korelacji.
Istnieją co najmniej cztery konkurencyjne kierunki:
- mikrochimeryczne komórki pomagają wywołać uszkodzenie;
- trafiają do tkanki już objętej zapaleniem;
- uczestniczą w naprawie;
- są obojętnym śladem wspólnej historii ciąży i wieku.
Badanie przekrojowe z biopsji nie ustala kolejności. Choroba zmienia przepuszczalność, chemokiny i przeżycie komórek, więc większa liczba może być skutkiem. Ponadto ciąża, liczba porodów, wiek, HLA, leczenie i sposób pobrania są potencjalnymi confounderami. Przeglądy podkreślają biologiczną wiarygodność wielu hipotez, ale także niejednorodność metod i wyników.12
Nowotwór: obserwator, naprawiacz czy uczestnik niszy
W tkankach nowotworowych również wykrywano komórki płodowe. Mogą wchodzić do naczyń, zrębu lub przedziałów przypominających nabłonek. Obecność w guzie nie dowodzi transformacji tych komórek. Guz rekrutuje krążące komórki, zmienia bariery i tworzy środowisko gojenia rany.
Aby przypisać rolę przyczynową, trzeba wykazać pochodzenie komórki, jej fenotyp, klonalność, mutacje nowotworowe, lokalizację i funkcjonalny wpływ. Sam chromosom Y w skrawku kobiecego guza nie spełnia tych kryteriów. Perspektywa regeneracji i onkologii traktuje mikrochimeryzm jako interesujący składnik mikrośrodowiska, ale nie jako uniwersalny czynnik ochronny ani rakotwórczy.13
Naprawa tkanek: lokalizacja nie jest funkcją
Komórki płodowe znajdowano w miejscach uszkodzeń i przypisywano im fenotypy różnych linii. Mogą odpowiadać na chemokiny, przechodzić przez śródbłonek i uczestniczyć w reakcji naprawczej. Jednak barwienie dwóch markerów nie dowodzi, że komórka przejęła pracę dojrzałego hepatocytu, kardiomiocytu czy neuronu.
Hierarchia dowodu wygląda następująco:
pochodzenie genetyczne → lokalizacja → fenotyp → integracja strukturalna → funkcja komórki → wpływ na naprawę narządu
Każda strzałka wymaga osobnego testu. W modelu zwierzęcym można śledzić linię i perturbować jej napływ; u człowieka dominują materiały obserwacyjne. Dlatego określenie „komórki naprawcze” powinno być zarezerwowane dla wyników funkcjonalnych, nie samego współwystępowania z blizną.
Tolerancja nie jest biernością
Długie przeżycie mikrochimerycznej populacji sugeruje, że nie została całkowicie usunięta, ale „tolerowana” może oznaczać różne procesy. Komórki mogą ukrywać się w słabo nadzorowanej niszy, być zbyt nieliczne, aktywnie indukować limfocyty regulatorowe albo korzystać z częściowej zgodności HLA. Gospodarz może jednocześnie wykazywać tolerancję wobec jednych antygenów i pamięć wobec innych.
W ciąży ważne są nieodziedziczone antygeny matczyne oraz odziedziczone antygeny ojcowskie płodu. Ekspozycja zachodzi w szczególnym środowisku łożyska i rozwijającego się układu odpornościowego. Nie można jej traktować jak małej transfuzji u dorosłego. Analogicznie, tolerancja indukowana mieszanym chimeryzmem po kondycjonowaniu jest aktywnie tworzonym stanem, a nie prostym skutkiem znalezienia komórek dawcy.
Związek z chimerami rozwojowymi
Naturalny tetragametyzm i eksperymentalna chimera rozwojowa mają wspólną własność: linie o różnym pochodzeniu uczestniczą w budowie organizmu. Różnią się jednak projektem, gatunkiem, czasem wprowadzenia i pytaniem badawczym. W komplementacji blastocysty komórki dawcy wprowadza się do gospodarza z genetycznie wyłączoną niszą narządową, aby zwiększyć ich udział w określonym narządzie.
Nie wolno przenosić częstości lub łagodnego przebiegu naturalnego mikrochimeryzmu na bezpieczeństwo wysokiego chimeryzmu międzygatunkowego. Mała liczba ludzkich komórek krążących u człowieka i duży udział ludzkich PSC w rozwijającym się narządzie świni są różnymi układami. Mechanizm komplementacji i jego bariery opisuje artykuł Chimery i blastocyst complementation.
Związek z ksenotransplantacją
Po przeszczepieniu świńskiego narządu człowiekowi powstaje anatomicznie zlokalizowany chimeryzm ksenogeniczny, a komórki świni lub ich DNA mogą pojawiać się w krwi. To ma szczególne znaczenie w nadzorze zakażeń. Wykrycie sekwencji PERV może wynikać z obecności świńskiej komórki niosącej prowirus, a nie z produktywnego zakażenia ludzkich komórek.14
Rozróżnienie wymaga testów komórkowych i molekularnych: ilości świńskiego DNA genomowego, RNA wirusa, integracji, zakaźnych cząstek oraz zmiany w czasie. Sam dodatni PCR nie rozdziela mikrochimeryzmu od transmisji. Szerszy kontekst barier immunologicznych i fizjologicznych znajduje się w artykule Ksenotransplantacja narządów.
Jak badać związek mikrochimeryzmu z chorobą
Dobry projekt powinien najpierw precyzyjnie zdefiniować ekspozycję: typ komórki, marker dawcy, tkankę, ilość i czas. Następnie określić wynik kliniczny oraz alternatywne przyczyny. Grupa kontrolna powinna być porównywalna pod względem wieku, historii ciąż, transfuzji i transplantacji. Laboratorium powinno być zaślepione na stan choroby, a wynik potwierdzony więcej niż jednym markerem.
Silniejszy łańcuch dowodu obejmuje:
- zależność czasową poprzedzającą chorobę;
- powtarzalną zależność dawka–odpowiedź;
- identyfikację konkretnego fenotypu komórek;
- mechanizm wykazany przez perturbację w odpowiednim modelu;
- odtworzenie wyniku w niezależnej kohorcie;
- wykluczenie wpływu ciąży, wieku i techniki pomiarowej.
Nawet wtedy model zwierzęcy nie dowodzi klinicznego efektu u człowieka. Łożysko, częstość wymiany i odporność różnią się między gatunkami. Badanie człowieka może natomiast pokazać skutek populacyjny, ale słabiej identyfikuje mechanizm. Oba typy dowodu powinny się spotkać.
Karta interpretacji nieoczekiwanego drugiego profilu
| Pytanie | Dlaczego jest konieczne | Co może rozstrzygnąć |
|---|---|---|
| Czy drugi profil powtórzył się z nowej ekstrakcji? | wyklucza część kontaminacji | niezależne przygotowanie próbki |
| Czy występuje w nowym pobraniu? | oddziela organizm od probówki | kontrolowany łańcuch pobrania |
| W jakich tkankach go widać? | określa topografię | krew, nabłonek, cebulki włosów |
| Jaka jest historia HSC, narządu i transfuzji? | wskazuje nabyte źródło | dokumentacja medyczna |
| Czy była ciąża lub ciąża bliźniacza? | wskazuje naturalny transfer | wywiad i dokumentacja prenatalna |
| Czy profil odpowiada znanej osobie? | identyfikuje źródło | genotyp dawcy lub rodziny |
| Czy sygnał pochodzi z żywych komórek? | DNA nie dowodzi komórki | sortowanie, single-cell, histologia |
| Czy frakcja zmienia się w czasie? | odróżnia tranzyt od wszczepienia | próbki seryjne |
Kolejność ma znaczenie. Najpierw sprawdza się jakość próbki i częste wyjaśnienia, potem rzadkie mechanizmy. „Chimera” nie powinna być nazwą dla każdego trudnego elektroferogramu.
Jakich twierdzeń unikać
Nie należy pisać, że kobieta „nosi DNA wszystkich swoich dzieci w każdym narządzie”. Wykrycie zależy od osoby, tkanki, metody i próby. Nie należy też stwierdzać, że komórki płodowe „leczą matkę” lub „wywołują autoimmunizację” jako ogólnej zasady. Obie funkcje są biologicznie możliwe w określonych modelach, ale dane ludzkie często pozostają obserwacyjne.
Niepoprawne jest również zdanie, że przeszczep „zmienia DNA pacjenta”. Zmienia skład komórkowy wybranych przedziałów; nie edytuje genomu wszystkich komórek. Po HSC próbka krwi może mieć genom dawcy właśnie dlatego, że krew została odbudowana z innych komórek, a nie dlatego, że genom biorcy został przepisany.
Wreszcie naturalny chimeryzm nie jest dowodem, że dowolne połączenie komórek dwóch gatunków będzie obojętne. Skala, moment rozwoju, bariera gatunkowa i rodzaj zajętej tkanki są krytyczne.
Co właściwie zostało wykazane
- U człowieka mogą współistnieć populacje komórek pochodzących z różnych zygot.
- Fuzja wczesnych zarodków może prowadzić do chimeryzmu tetragametycznego o nierównym rozmieszczeniu między tkankami.
- Komórki przechodzą przez łożysko w obu kierunkach, a część może utrzymywać się długo po ciąży.
- Wymiana między bliźniętami może tworzyć trwały chimeryzm, szczególnie w układzie krwiotwórczym.
- Allogeniczny przeszczep HSC celowo zastępuje krwiotworzenie biorcy linią dawcy; chimeryzm ma wtedy bezpośrednie znaczenie kliniczne.
- Narządy lite i transfuzje także mogą być źródłem komórek obcego pochodzenia, ale trwałość i częstość po transfuzji zależą od kontekstu.
- STR, qPCR, digital PCR, NGS i metody single-cell mierzą różne aspekty zjawiska i mają różne granice błędu.
- Chimeryzm może zmienić interpretację diagnostyki germline, badania pokrewieństwa oraz identyfikacji materiału biologicznego.
- W ksenotransplantacji mikrochimeryzm może naśladować molekularny sygnał transmisji PERV.
Czego nadal nie wiemy
- Jak często niewykryty tetragametyzm występuje w populacji, skoro większość ludzi nie jest badana w wielu tkankach.
- Które dokładnie komórki matczyne i płodowe tworzą długowieczne populacje oraz w jakich niszach się odnawiają.
- Kiedy mikrochimeryzm jest neutralnym śladem, kiedy moduluje tolerancję, a kiedy uczestniczy w chorobie lub naprawie.
- Jak oddzielić przyczynę od rekrutacji komórek do już chorej tkanki w badaniach ludzkich.
- Jakie progi i dynamika chimeryzmu najlepiej przewidują wynik w różnych wskazaniach transplantacyjnych.
- Na ile współczesna preparatyka krwi zmieniła ryzyko trwałego mikrochimeryzmu potransfuzyjnego.
- Jak wiarygodnie mapować bardzo rzadkie komórki w całym organizmie bez inwazyjnego pobierania wielu tkanek.
- Czy biologiczne skutki zależą bardziej od liczby komórek, ich fenotypu, zgodności HLA, położenia czy czasu ekspozycji.